O Poder da Nutrição na Competição: Estratégias para Maximizar o Desempenho

Atletas de alto nível enfrentam diversos fatores que limitam o desempenho — seja esgotamento de combustível muscular, fadiga do sistema nervoso central (SNC), desidratação, ambiente difícil, ou ainda decisões tácticas/emocionais durante a prova.
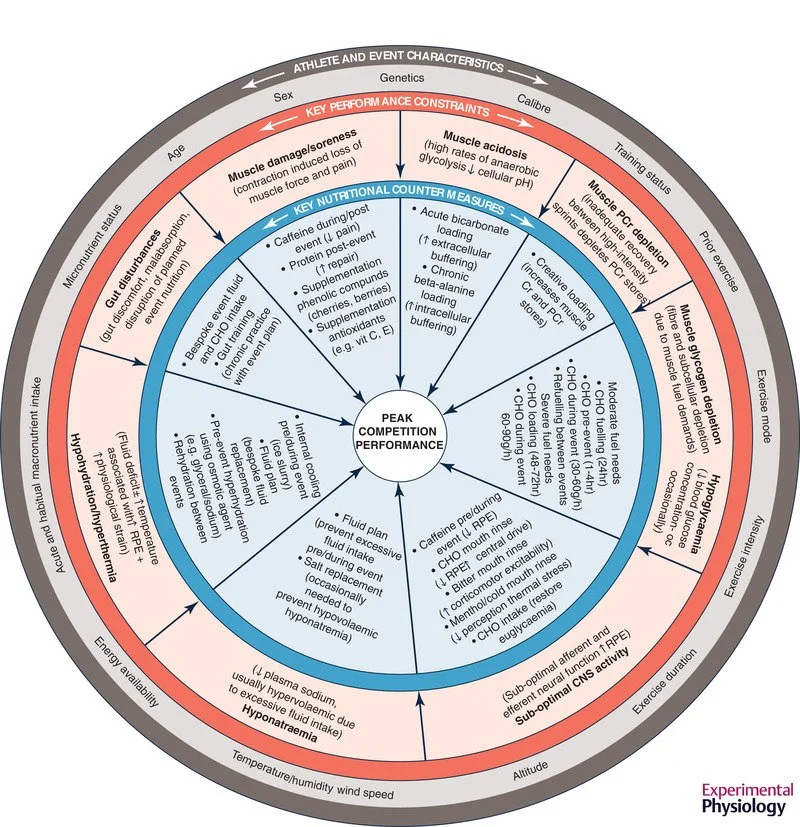
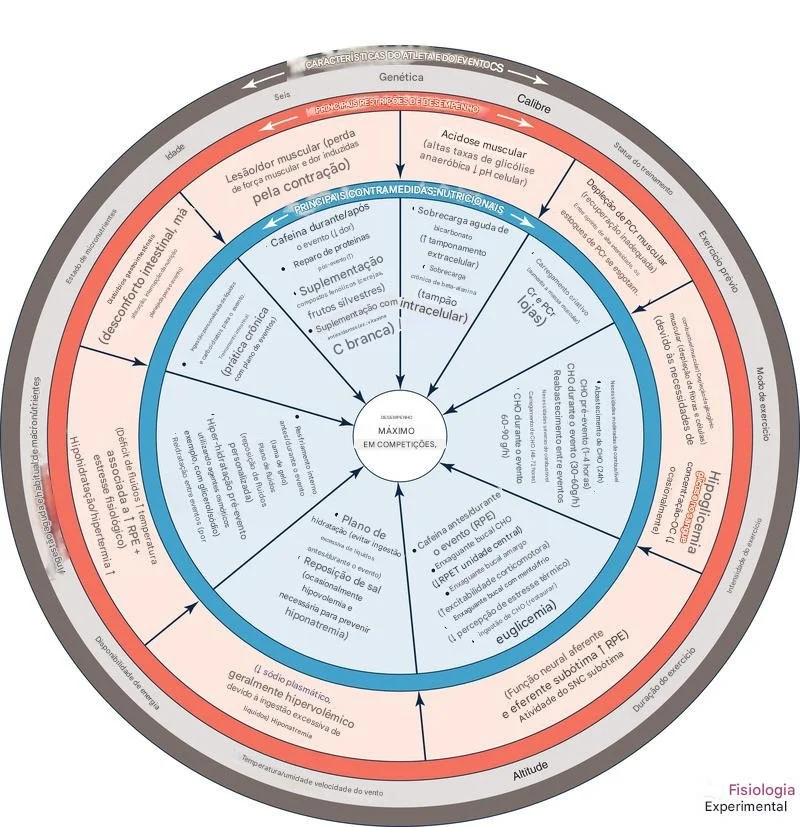
Burke (2021) propõe que a nutrição de competição (antes, durante e entre provas) seja vista como um contramedida estratégica dirigida a esses fatores limitantes — isto é, não só comer bem, mas comer com propósito competitivo.

Principais áreas de intervenção

A nutrição para competição atua em três grandes domínios:
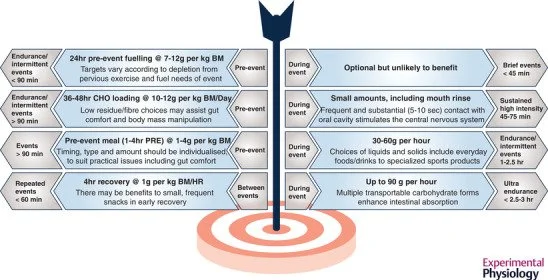
  1. Disponibilidade de combustível

    • Suplementação com Creatina para aumentar os níveis de fosfocreatina muscular (PCr) — importante em esforços repetidos de alta intensidade ou com pouco tempo de recuperação.

    • Estratégias para otimizar o consumo de carboidratos (CHO): montagem de reservas de glicogénio (muscular e hepático), ingestão de CHO antes e durante a prova, utilização de “rinse” oral de CHO para efeitos centrais.

    • Avaliação de dietas cetogénicas ou suplementos de cetona como alternativas aos CHO — embora a evidência até agora sugira utilidade limitada para a maioria dos atletas de competição.

  2. Efeitos no sistema nervoso central (SNC)

    • A nutrição também pode atuar via mecanismos centrais: por exemplo, o “mouth‐rinse” de CHO (sem ser ingerido) parece activar centres cerebrais de recompensa ou de impulso, podendo melhorar desempenho mesmo sem aumento substancial de energia.

    • Substâncias como cafeína ou outros gustativos (mentol, acético, quinina) têm papel no corte de fadiga, melhoria de alertness ou modulação de percepção de esforço.

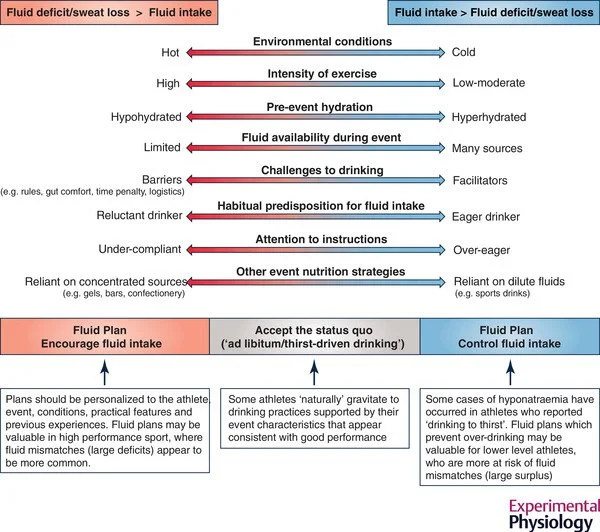
  3. Hidratação e equilíbrio de fluidos

    • Apesar de extensa pesquisa, ainda há debates sobre quanta desidratação realmente prejudica o desempenho e qual o melhor plano de hidratação em competição.

    • O autor propõe um modelo de “zona” em que, para alguns atletas ou eventos, basta beber ad libitum (à sede) ou “como habitualmente”; noutros, onde se espera um défice grande, é necessário um plano individualizado de fluidos.
Considerações práticas & desafios

  • A nutrição de competição deve ser específica ao evento, ao atleta e ao ambiente competitivo — ou seja, não há “one‐size‐fits‐all”.

  • A interação entre várias estratégias nutricionais pode ser complexa. Por exemplo: tomar cafeína + grandes quantidades de CHO pode reduzir o efeito de uma ou de ambas.

  • A implementação real em competição é mais difícil que em laboratório: logística, horários, ambiente, regras da prova, stress, viagens, cultura alimentar — todos estes factores entram em jogo. acuresearchbank.acu.edu.au

  • A nutrição também tem componente psicológica: familiaridade com o plano, conforto gastrointestinal, percepções de eficácia (“placebo”) podem influenciar o sucesso da estratégia. PMC

Conclusão para o blog

Em suma: Para atletas de elite, o diferencial não está apenas em treinar mais forte, mas em usar a nutrição como uma ferramenta tática — antes, durante e entre competições — para adiar ou mitigar os fatores que “quebram” o desempenho. A nutrição de competição ideal combina:

  • Garantir que os combustíveis (ex: glicogénio, PCr) estão disponíveis e são bem usados;

  • Ativar mecanismos do sistema nervoso central para manter intensidade, foco e ritmo ao longo da prova;

  • Gerir o estado de hidratação de forma inteligente, consoante a exigência do evento e as condições ambientais.

Para o leitor de um blog, os principais “take‑aways” seriam:

  • Planeie a nutrição com vista ao evento (não só “comer bem” mas “comer certo para a prova”).

  • Treine também a nutrição (ex: tolerância intestinal, “gut training”), não apenas o treino físico.

  • Reconheça que hidratação nem sempre significa “beber ao máximo” — o excesso ou o défice podem ambos prejudicar.

  • Use estratégias simples mas eficazes como CHO boca‐rinse ou cafeína, desde que compatíveis com as regras antidopagem e a tolerância pessoal.

Dra. Andreia Torres é Nutricionista, especialista em nutrição clínica, esportiva e funcional, com mestrado em nutrição humana, doutorado em psicologia clínica e cultura/ensino na saúde, pós-doutorado em saúde coletiva. Também possui formações no Brasil e nos Estados Unidos em práticas integrativas em saúde. Para contratar envie uma mensagem: http://andreiatorres.com/consultoria/

mTORc e autismo

A via mTOR é um sistema de sinalização celular essencial para o crescimento, o metabolismo energético, a síntese de proteínas e a comunicação entre neurónios. O seu nome deriva de mechanistic Target of Rapamycin, ou alvo mecanístico da rapamicina.

No cérebro em desenvolvimento, esta via participa na formação e maturação das sinapses, estruturas que permitem a comunicação entre neurônios. Também contribui para a plasticidade sináptica, ou seja, a capacidade de modificar as ligações neuronais em resposta à experiência e à aprendizagem.

Um estudo de revisão publicado em 2023 na revista Molecules, intitulado mTOR Signaling Disruption and Its Association with the Development of Autism Spectrum Disorder, explora a relação entre alterações desta via e o transtorno do espectro autista (TEA).

Como funciona a via mTOR?

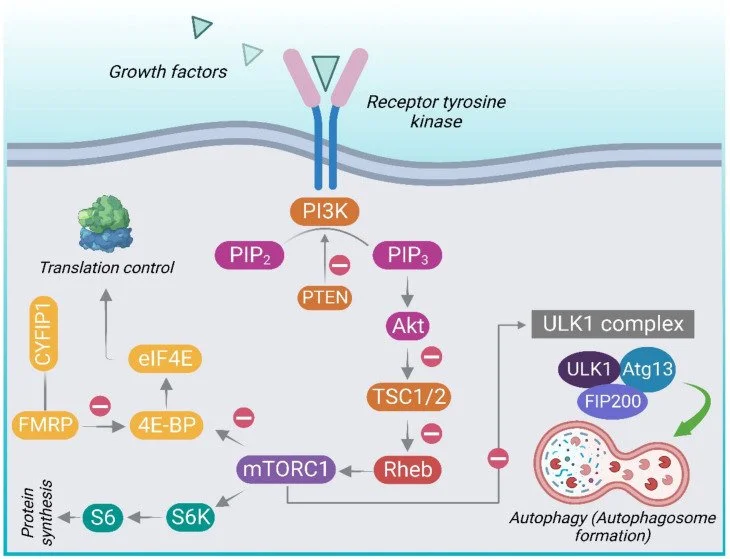
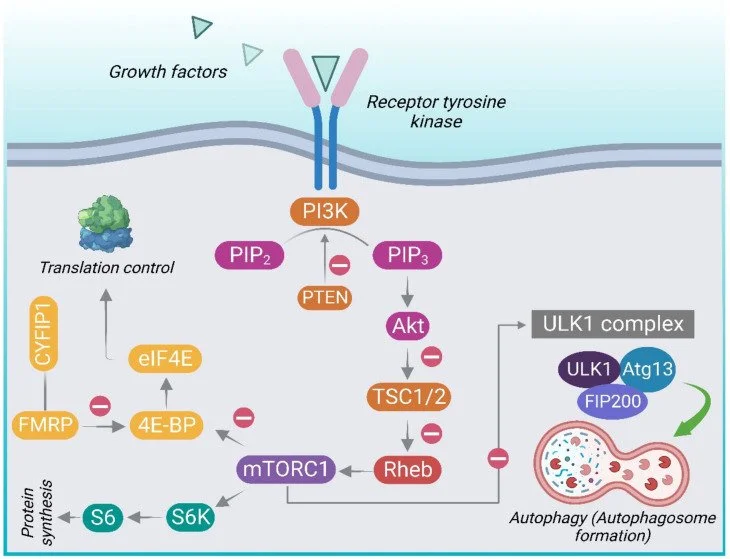
A via PI3K/Akt/mTOR funciona como um sistema de controle que integra sinais relacionados com nutrientes, energia, fatores de crescimento e necessidades celulares.

De forma simplificada, podemos compreender o seu funcionamento em três etapas:

1. Receção de sinais. A célula recebe informações sobre a disponibilidade de nutrientes, energia e fatores de crescimento.

2. Ativação da sinalização. Proteínas como PI3K e Akt transmitem esses sinais até à via mTOR, regulando a atividade dos seus complexos, sobretudo do mTORC1.

3. Resposta celular. O mTORC1 regula a síntese de proteínas, o crescimento celular e a autofagia, um processo através do qual a célula degrada e recicla componentes danificados ou desnecessários.

Esta regulação é particularmente importante no cérebro, onde a produção de proteínas e a renovação das estruturas celulares precisam de ocorrer de forma coordenada.

O objetivo não é manter a via permanentemente ativa ou inativa, mas assegurar que responde adequadamente às necessidades do organismo.

A interrupção na cascata de sinalização de mTOR estimula a tradução truncada em células neuronais e leva à regulação negativa da síntese proteica nas espinhas dendríticas do cérebro. Essa sinalização irregular leva a alterações na estrutura cerebral, formação anormal de sinapses, superexpressão de células gliais, neuroinflamação, estresse oxidativo e disfunção mitocondrial no cerebelo, córtex cerebral, hipocampo e amígdala. Um aumento no volume cerebral total e alterações na proporção de substância cinzenta/branca também são observados em indivíduos autistas, além de alterações nos circuitos GABAérgicos e glutamatérgicos.

Via de sinalização mTOR

Diferentes estímulos extracelulares, como fatores de crescimento e insulina, mediam seus efeitos ligando-se a receptores pertencentes à família dos receptores tirosina quinase (RTK). Isso leva à ativação da fosfatidilinositol-4,5-bisfosfato 3-quinase (PI3K). A PI3K converte fosfatidilinositol (3,4)-bisfosfato (PIP2) em fosfatidilinositol (3,4,5)-trifosfato (PIP3), que recruta a Akt-quinase e estimula a fosforilação da Akt por PDK1 e mTORC2, nos sítios Thr308 e Ser473, respectivamente. A ativação da via PI3K/Akt por meio da inibição do TSC (complexo da esclerose tuberosa) leva à ativação de mTORC1.

Qual é a relação entre mTOR e autismo?

A investigação sugere que alterações na regulação da via PI3K/Akt/mTOR podem contribuir para algumas formas de disfunção do neurodesenvolvimento associadas ao TEA.

Esta relação é particularmente relevante em determinadas condições genéticas, como a esclerose tuberosa e a síndrome do X frágil. Na esclerose tuberosa, alterações nos genes TSC1 ou TSC2 podem comprometer os mecanismos que limitam a atividade do mTORC1. O gene PTEN também participa neste controlo, funcionando como regulador negativo da sinalização PI3K/Akt.

Na síndrome do X frágil, alterações no gene FMR1 comprometem a produção da proteína FMRP, que participa na regulação da tradução de proteínas, incluindo em estruturas neuronais.

Estas condições demonstram que diferentes alterações genéticas podem convergir em mecanismos relacionados com a síntese proteica, a plasticidade sináptica e o desenvolvimento cerebral.

É importante, contudo, compreender que o TEA é heterogêneo. Nem todas as pessoas autistas apresentam as mesmas alterações moleculares, e a hiperativação do mTOR não constitui uma característica universal do diagnóstico.

O que acontece quando a regulação da via é alterada?

Quando a sinalização mTORC1 se encontra excessivamente ativa em determinados contextos, pode ocorrer aumento da síntese de algumas proteínas e redução da autofagia.

No cérebro, estas alterações podem interferir com a formação, a maturação e a eliminação seletiva de sinapses. O resultado pode ser uma organização diferente das redes neuronais e alterações na comunicação entre células nervosas.

Estudos pré-clínicos, sobretudo em modelos animais de condições genéticas específicas, demonstram que a modulação desta via pode melhorar determinadas alterações celulares e comportamentais.

No entanto, os resultados obtidos em animais não demonstram, por si só, que a mesma intervenção seja eficaz ou segura em pessoas autistas. Também não permitem concluir que a modulação do mTOR seja suficiente para alterar as características centrais do TEA.

Onde entra a nutrição?

A via mTOR responde a sinais nutricionais, incluindo a disponibilidade de determinados aminoácidos, como a leucina, e ao estado energético celular. Por esse motivo, a alimentação constitui uma área relevante de investigação sobre o metabolismo e o neurodesenvolvimento.

Contudo, influenciar uma via molecular não significa necessariamente melhorar os sintomas do autismo. É necessário demonstrar que a intervenção produz benefícios clínicos relevantes, seguros e reproduzíveis.

Entre as estratégias estudadas encontram-se:

Aminoácidos. Diferentes aminoácidos podem modular a sinalização mTOR de formas distintas. Os efeitos dependem do aminoácido, da concentração, do tecido e do contexto metabólico. Não existe evidência clínica suficiente para recomendar a restrição ou a suplementação de aminoácidos específicos com o objetivo de tratar os sintomas centrais do TEA.

Dieta cetogénica. Este padrão alimentar, caracterizado por uma ingestão muito reduzida de hidratos de carbono e maior proporção de gordura, tem sido investigado pelos seus efeitos sobre o metabolismo energético, a sinalização celular e a função cerebral. Existem estudos clínicos preliminares em pessoas autistas, mas as amostras são limitadas e os resultados ainda não permitem estabelecer a dieta cetogénica como tratamento de rotina para o TEA. A sua aplicação exige avaliação individual e acompanhamento clínico e nutricional.

Luteolina e outros compostos vegetais. Alguns compostos bioativos demonstram efeitos anti-inflamatórios ou moduladores de vias celulares em estudos laboratoriais e animais. Porém, estes resultados não comprovam eficácia terapêutica em seres humanos, nem justificam a utilização de suplementos para regular o mTOR sem evidência clínica adequada.

Estado nutricional e metabolismo energético. A adequação da ingestão de proteínas, vitaminas, minerais, ácidos gordos e outros nutrientes é importante para o crescimento, o funcionamento neurológico e a saúde geral. Em pessoas autistas com seletividade alimentar, restrições dietéticas ou alterações gastrointestinais, a avaliação nutricional pode ser particularmente relevante.

A evidência atual não permite estabelecer um protocolo nutricional universal destinado a normalizar a via mTOR em todas as pessoas com TEA.

Microbiota intestinal, inflamação e ritmo circadiano

A via mTOR não atua isoladamente. A sua atividade interage com outros sistemas envolvidos na resposta imunitária, no metabolismo energético e na função celular.

A microbiota intestinal, por exemplo, participa na produção de metabólitos que podem influenciar a comunicação entre o intestino e o cérebro. Alterações da microbiota e sintomas gastrointestinais são descritos em algumas pessoas autistas, mas a existência de uma associação não demonstra que a disbiose seja a causa do TEA.

O sono e os ritmos circadianos também se relacionam com o metabolismo celular e com a regulação de vias de sinalização. Perturbações do sono são frequentes em pessoas autistas e merecem avaliação e intervenção apropriadas. Ainda assim, não é possível concluir que sejam causadas por hiperatividade do mTOR.

O que significa isto na prática clínica?

A investigação sobre mTOR ajuda a compreender como alterações genéticas e metabólicas podem influenciar o desenvolvimento cerebral. No entanto, a avaliação clínica de uma pessoa autista deve considerar as suas necessidades individuais, incluindo estado nutricional, crescimento, seletividade alimentar, saúde gastrointestinal, sono e condições concomitantes.

A alimentação deve ser planeada para assegurar adequação nutricional, corrigir deficiências identificadas e apoiar a saúde global. Dietas restritivas e suplementação devem ter uma indicação clara e ser acompanhadas por profissionais qualificados.

Atualmente, não existe um exame nutricional de rotina que permita identificar uma suposta «hiperatividade de mTOR» em todas as pessoas autistas, nem um protocolo alimentar validado para corrigir esta via e tratar os sintomas centrais do TEA.

Referências

  1. Thomas SD, Jha NK, Ojha S, Sadek B. mTOR Signaling Disruption and Its Association with the Development of Autism Spectrum Disorder. Molecules. 2023;28(4):1889. doi: 10.3390/molecules28041889.

  2. Costa-Mattioli M, Monteggia LM. mTOR complexes in neurodevelopmental and neuropsychiatric disorders. Nature Neuroscience. 2013;16:1537-1543. doi: 10.1038/nn.3546.

  3. Lipton JO, Sahin M. The neurology of mTOR. Neuron. 2014;84(2):275-291. doi: 10.1016/j.neuron.2014.09.034.

Dra. Andreia Torres é Nutricionista, especialista em nutrição clínica, esportiva e funcional, com mestrado em nutrição humana, doutorado em psicologia clínica e cultura/ensino na saúde, pós-doutorado em saúde coletiva. Também possui formações no Brasil e nos Estados Unidos em práticas integrativas em saúde. Para contratar envie uma mensagem: http://andreiatorres.com/consultoria/

Gene CBS, transulfuração e ciclo da metionina

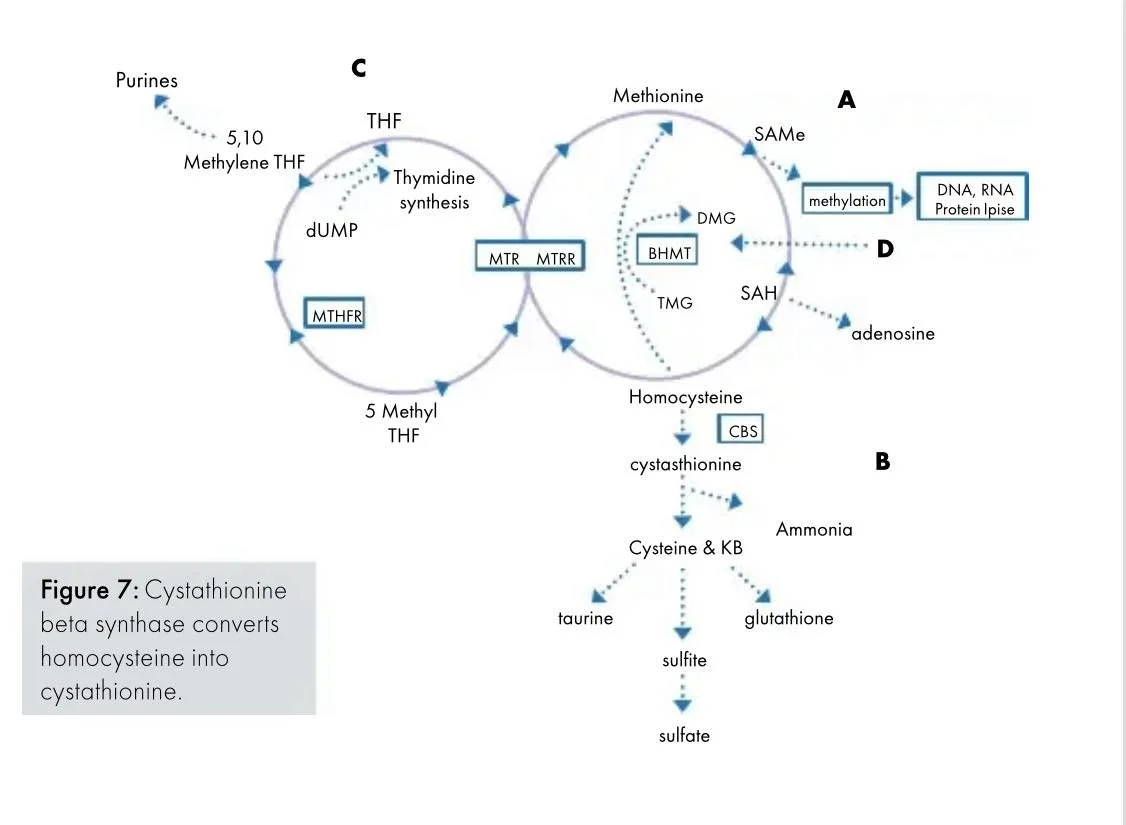
O gene CBS codifica a enzima cistationina β-sintase, responsável pela primeira etapa irreversível da via de transulfuração. Nessa reação, a homocisteína condensa-se com a serina para formar cistationina, que será posteriormente convertida em cisteína.

A cisteína participa da síntese de diversas moléculas biologicamente relevantes, incluindo a glutationa, um dos principais sistemas antioxidantes intracelulares, além de outras moléculas sulfuradas.

A via de transulfuração conecta, portanto, o metabolismo da metionina ao metabolismo da cisteína e contribui para a regulação da homocisteína. A sua atividade depende de diversos fatores, incluindo a expressão e a função da CBS, a disponibilidade de substratos, a vitamina B6 na forma de piridoxal-5'-fosfato e os mecanismos de regulação metabólica.

Variantes genéticas patogênicas que reduzem significativamente a atividade da CBS podem provocar homocistinúria clássica, uma doença genética associada ao acúmulo de homocisteína e metionina, bem como à redução da disponibilidade de cisteína. É importante distinguir estas variantes patogênicas dos polimorfismos comuns, que não apresentam necessariamente consequências clínicas relevantes [1, 2].

Variantes CBS C699T e C1080T

As variantes historicamente designadas como CBS C699T e C1080T correspondem a alterações sinônimas na sequência codificante do gene. A variante C699T corresponde a p.Tyr233=, enquanto C1080T, na nomenclatura histórica, corresponde a p.Ala360=, sendo que a designação convencional C1080T depende da orientação e da nomenclatura utilizadas na publicação.

Estas alterações não modificam diretamente a sequência de aminoácidos da proteína. Embora variantes sinônimas possam, em determinadas circunstâncias, influenciar o processamento do RNA, a estabilidade do transcrito ou a expressão proteica, esses efeitos precisam de ser demonstrados experimentalmente.

Um estudo publicado em 1993 identificou ambas as alterações como variantes sinônimas. Posteriormente, um estudo populacional com 785 participantes analisou polimorfismos no locus CBS e não encontrou efeitos estatisticamente significativos dessas variantes sobre as concentrações plasmáticas de homocisteína [2, 3].

Assim, não existe fundamento suficiente para afirmar que CBS C699T ou C1080T aumentam a atividade da enzima em dez vezes. Essa afirmação não deve ser utilizada como fato estabelecido sem a apresentação de um estudo experimental primário que demonstre diretamente tal magnitude de efeito.

A interpretação clínica de um resultado genético deve considerar a variante exata, a classificação clínica, o contexto molecular e os parâmetros bioquímicos do indivíduo. A identificação isolada de um polimorfismo não permite concluir que existe hiperatividade da CBS.

Homocisteína, cisteína e glutationa

A homocisteína pode seguir duas vias metabólicas principais:

  1. Remetilação: a homocisteína é reconvertida em metionina, processo que envolve folato, vitamina B12 e enzimas específicas.

  2. Transulfuração: a homocisteína é convertida em cistationina pela CBS e, posteriormente, em cisteína por ação da cistationina γ-liase, codificada pelo gene CTH.

A cisteína pode ser utilizada na síntese de glutationa, constituída por glutamato, cisteína e glicina. Também pode ser metabolizada por vias que contribuem para a produção de taurina e sulfato.

A distribuição da cisteína entre estas vias depende de múltiplos fatores, como a disponibilidade de substratos, a atividade enzimática, o estado redox, as necessidades celulares e os mecanismos regulatórios. Por esse motivo, não é possível concluir que um eventual aumento da atividade da CBS provoque necessariamente uma redução da glutationa ou um aumento proporcional da taurina e do sulfato.

Da mesma forma, concentrações reduzidas de glutationa não demonstram, isoladamente, que exista excesso de enxofre ou hiperatividade da CBS.

A avaliação do metabolismo sulfurado deve considerar o contexto clínico e os dados laboratoriais pertinentes, em vez de atribuir os resultados a um único polimorfismo genético [1, 4].

Compostos sulfurados, sulfito e sulfeto de hidrogênio

O metabolismo do enxofre envolve diferentes compostos com propriedades bioquímicas distintas. Entre eles encontram-se a cisteína, a glutationa, o sulfito, o sulfato e o sulfeto de hidrogénio (H₂S).

O sulfito é oxidado a sulfato pela enzima sulfito oxidase, codificada pelo gene SUOX. Esta enzima contém um cofator de molibdênio e desempenha um papel fundamental no metabolismo dos compostos sulfurados.

A deficiência grave de sulfito oxidase ou de molibdênio cofatorial pode comprometer esta reação e provocar acumulação de sulfito, com consequências neurológicas potencialmente graves. Estas condições são distintas da simples presença de um polimorfismo comum no gene CBS.

O sulfeto de hidrogênio, por sua vez, é uma molécula sinalizadora produzida endogenamente. Em concentrações fisiológicas, participa em processos de sinalização celular e na regulação vascular e mitocondrial. Em concentrações excessivas, pode inibir a respiração mitocondrial e exercer efeitos tóxicos.

Contudo, não é cientificamente adequado inferir que uma variante comum da CBS causa elevação de H₂S no cérebro, neurotoxicidade ou alterações cognitivas sem evidência clínica e bioquímica específica.

A presença de sulfito, sulfato e sulfeto de hidrogênio deve ser interpretada individualmente, considerando as suas diferenças metabólicas e toxicológicas [4, 5].

Molibdênio e sulfito oxidase

O molibdénio é um oligoelemento essencial que integra cofatores utilizados por determinadas enzimas humanas, incluindo a sulfito oxidase. A atividade desta enzima é indispensável à conversão do sulfito em sulfato.

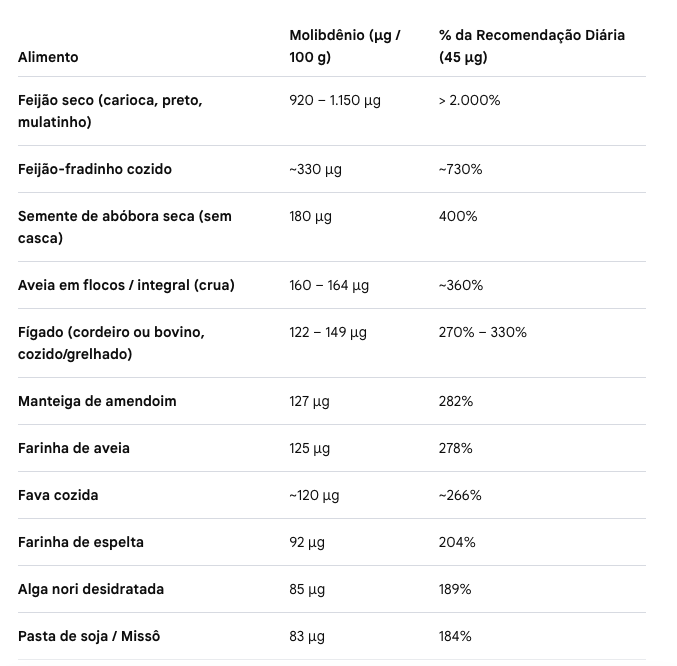
Fontes de molibdênio: feijão, ervilha, lentilha, soja, fígado, semente de abóbora e aveia.

A deficiência hereditária de cofator de molibdênio e a deficiência isolada de sulfito oxidase são doenças raras, com manifestações clínicas distintas das alterações comuns encontradas em testes genéticos comerciais.

A existência de uma variante CBS não permite presumir deficiência de molibdênio, sobrecarga da sulfito oxidase ou necessidade de suplementação.

A suplementação deve ser considerada apenas quando existir uma indicação clínica fundamentada, uma vez que a administração indiscriminada de micronutrientes pode ser desnecessária e, dependendo da dose e do contexto, prejudicial.

O ciclo da metionina e a importância da metilação

A metilação é um conjunto de reações bioquímicas que envolvem a transferência de grupos metilo entre moléculas. O ciclo da metionina participa na produção de S-adenosilmetionina (SAM), um dos principais doadores de grupos metilo do organismo.

A SAM participa em numerosas reações, incluindo a metilação de DNA, RNA, proteínas, fosfolípidos e outras moléculas. Estas reações contribuem para a regulação da expressão genética, a manutenção das membranas celulares e o metabolismo de determinados neurotransmissores.

O metabolismo de um carbono também está relacionado com a síntese de nucleótidos e com a manutenção de processos celulares essenciais. O folato e a vitamina B12 desempenham funções importantes nestas vias.

No entanto, a expressão genérica «ciclo de metilação» não deve ser utilizada para atribuir todas as funções celulares a uma única via metabólica. A mielinização, a função imunitária, a síntese de neurotransmissores e a integridade intestinal dependem de redes complexas de mecanismos bioquímicos, nutricionais e fisiológicos.

Da mesma forma, a presença de variantes em MTHFR, MTR, MTRR ou CBS não demonstra, por si só, uma deficiência funcional generalizada de metilação nem determina a necessidade de suplementação com doses elevadas de vitaminas do complexo B.

A avaliação deve integrar o quadro clínico, a alimentação, os medicamentos utilizados e, quando indicado, parâmetros laboratoriais como homocisteína, vitamina B12, folato e outros marcadores relevantes.

CBS, glutamato, GABA e metabolismo energético

O glutamato e o GABA são neurotransmissores com funções complementares no sistema nervoso central. O glutamato participa predominantemente na neurotransmissão excitatória, enquanto o GABA é o principal neurotransmissor inibitório do cérebro adulto.

A enzima glutamato descarboxilase (GAD) converte glutamato em GABA, utilizando piridoxal-5'-fosfato como cofator. A atividade desta enzima pode ser afetada por condições específicas, incluindo determinados processos autoimunes, mas a presença de sintomas neurológicos inespecíficos não permite concluir que exista deficiência de GAD.

O α-cetoglutarato integra o ciclo dos ácidos tricarboxílicos e participa no metabolismo dos aminoácidos, incluindo as interconversões entre glutamato e outros intermediários metabólicos.

A glutamina, o glutamato, o GABA e o α-cetoglutarato encontram-se ligados por diferentes reações bioquímicas, mas não constituem um circuito simples e livremente reversível. Cada reação possui mecanismos de regulação próprios.

Não existe evidência clínica suficiente para estabelecer uma relação causal direta entre os polimorfismos CBS C699T ou C1080T e alterações do GABA, do glutamato, do metabolismo energético cerebral ou da chamada névoa cerebral.

Também não se deve atribuir automaticamente alterações destas vias à exposição a alumínio ou mercúrio sem demonstração da exposição, da dose e do efeito biológico relevante.

CBS e autismo: limitações da hipótese genética

O transtorno do espectro do autismo (TEA) é uma condição do neurodesenvolvimento caracterizada por diferenças na comunicação e interação social e por padrões restritos ou repetitivos de comportamentos, interesses ou atividades.

A sua etiologia é multifatorial, envolvendo fatores genéticos e processos do desenvolvimento. Não existe uma única variante genética que explique todos os casos, e a contribuição de cada fator varia entre indivíduos.

A observação de determinadas variantes genéticas numa amostra de crianças autistas não demonstra que essas variantes sejam responsáveis pelo diagnóstico. Para estabelecer uma associação, são necessários estudos adequadamente dimensionados, grupos de comparação, controlo de fatores de confusão e replicação independente.

Em particular, não existe evidência robusta de que CBS C699T seja uma variante determinante do autismo, de que provoque um estado de semi-hibernação cerebral ou de que explique a chamada névoa cerebral em crianças autistas.

Também não existe suporte científico para atribuir o aumento da prevalência identificada do autismo à exposição a metais pesados provenientes de vacinas ou à intensificação dos calendários de vacinação. A Organização Mundial da Saúde reafirmou, em dezembro de 2025, que a evidência científica de elevada qualidade não demonstra uma relação causal entre vacinas e autismo [6].

A investigação sobre fatores genéticos e ambientais deve continuar, mas as hipóteses mecanísticas não devem ser apresentadas como relações causais demonstradas.

Como abordar o tema na prática clínica?

A identificação de um polimorfismo comum não substitui a avaliação bioquímica. Quando existe indicação clínica, a homocisteína plasmática pode ajudar a avaliar o metabolismo deste aminoácido, enquanto a vitamina B12, o folato, a função renal e outros parâmetros podem contribuir para esclarecer alterações identificadas.

A homocisteína elevada pode resultar de múltiplas causas, incluindo deficiências nutricionais, alterações da função renal, determinados medicamentos e doenças metabólicas hereditárias. A interpretação deve ser feita no contexto clínico apropriado.

A suplementação com folato, vitamina B12, vitamina B6, molibdénio, glutationa ou outros compostos não deve ser orientada exclusivamente por um resultado genético. A intervenção nutricional deve responder a uma necessidade identificada e ser monitorizada de acordo com a indicação clínica.

APRENDA MUITO MAIS NO CURSO GENÔMICA VISUAL

Dra. Andreia Torres é Nutricionista, especialista em nutrição clínica, esportiva e funcional, com mestrado em nutrição humana, doutorado em psicologia clínica e cultura/ensino na saúde, pós-doutorado em saúde coletiva. Também possui formações no Brasil e nos Estados Unidos em práticas integrativas em saúde. Para contratar envie uma mensagem: http://andreiatorres.com/consultoria/