
A metilação do DNA é o fator epigenético mais bem caracterizado que controla a expressão de genes. O termo programação epigenética refere-se às mudanças moleculares reversíveis que ocorrem no DNA, RNA ou em histonas, proteínas que regulam a expressão dos genes.
Esta programação não modifica a sequência de bases do DNA. Inicia-se logo após a síntese do DNA. Por exemplo, você tem o mesmo material genético no pâncreas, no fígado, no neurônio e no couro cabeludo. Contudo, alguns genes expressam-se apenas no fígado, produzindo enzimas que contribuirão para eliminação de toxinas. Mas fígado não produz cabelo, que é produzido apenas no couro cabeludo.
Já neurônios produzem neurotransmissores e não insulina. Este hormônio, que ajuda a controlar as taxas de açúcar no sangue, é produzido apenas no pâncreas.

Sistemas do corpo humano
Como as células especializam-se tanto se possuem o mesmo DNA?
Isto acontece pois existem mecanismos epigenéticos que mantém alguns genes silenciados e outros genes disponíveis para transcrição. Um destes processos regulatórios é justamente a metilação do DNA. Alterações nos processos epigenéticos podem ocorrer em resposta a uma variedade de fatores normais ou patológicos, além de alterações ambientais, como disponibilidade de nutrientes, exposição à toxinas ou estresse.
Como ocorre a metilação?
A metilação nada mais é do que a união de um grupo metil (CH3) a alguma molécula. No caso do DNA de vertebrados, 4-8% de todas as citosinas e 70% das citosinas dentro da sequência dinucleotídica 5'CpG3' são metiladas.
Os sítios CpG ou sítios CG são regiões de DNA onde um nucleotídeo citosina é seguido por um nucleotídeo guanina na sequência linear de bases ao longo de sua direção 5' → 3'. Os locais CpG ocorrem com alta frequência em regiões genômicas chamadas ilhas CpG (ou ilhas CG). A letra p de CpG representa o fosfato de ligação.

As citosinas em dinucleotídeos CpG podem ser metiladas para formar 5-metilcitosinas. As enzimas que adicionam um grupo metil são chamadas de DNA metiltransferases. Em mamíferos, 70% a 80% das citosinas CpG são metiladas. A metilação da citosina dentro de um gene pode alterar sua expressão, um mecanismo que faz parte de um campo maior da ciência que estuda a regulação genética, chamado epigenética. As citosinas metiladas frequentemente sofrem mutação em timinas.
Em contraste, 70% das citosinas nas sequências dinucleotídicas 5'CpG3' dentro das regiões promotoras dos genes ativos não são metiladas. Existem aproximadamente 29.000 "ilhas CpG" (regiões ricas em 5'CpGs3') na sequência do genoma humano. O estado de metilação de metade destas ilhas regula a expressão do mRNA.
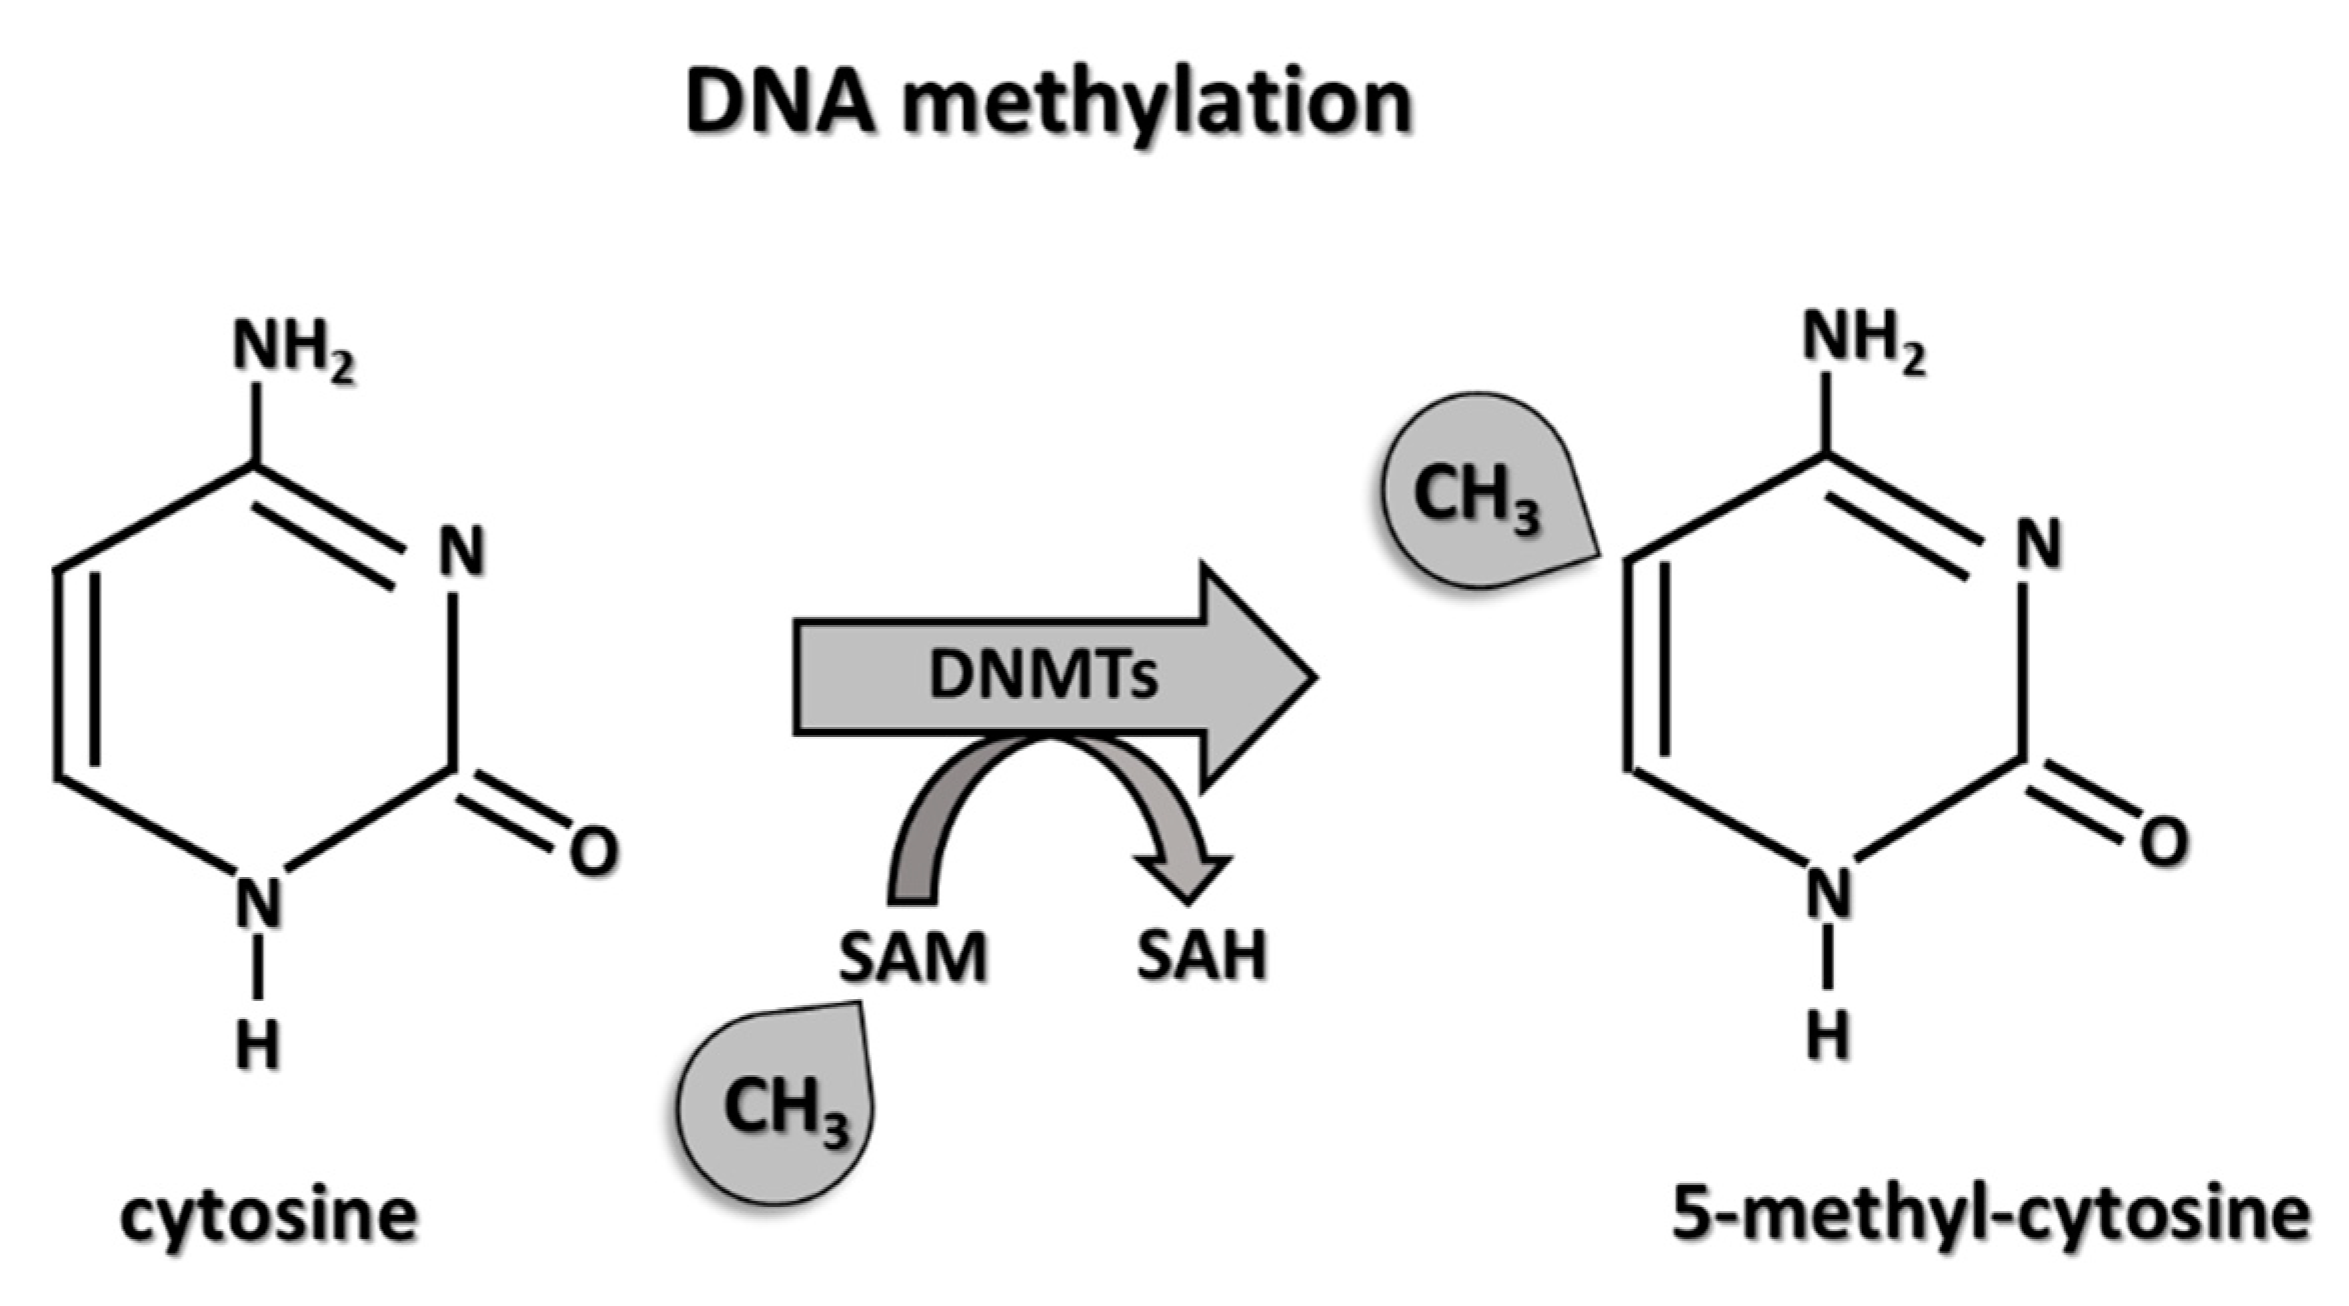
Metilação do DNA (Ciechomska, Roszkowski, Maslinski 2019)
As enzimas DNA metiltransferase (DNMT) são responsáveis pela metilação de sequências CpG, com a taxa de metilação determinada pela disponibilidade de DNMTs e sua afinidade relativa por um determinado local CpG no DNA e outros co-fatores.

DNMTs adicionam grupos metil (CH3) às citosinas em sequências de dinucleotídeos (Smith, Bolton, & Nguyen, 2010)
Normalmente, a metilação do DNA está associada ao silenciamento irreversível da expressão gênica. A metilação parcial do DNA promotor marca genes que podem se tornar não metilados e expressos, permitindo a readaptação a um micro ou macro ambiente em mudança (por exemplo, estação do ano, condições ecológicas, hábitos nutricionais e demandas de diferentes períodos de desenvolvimento).
A transcrição pode ser inibida por proteínas que se ligam direta ou indiretamente ao DNA metilado (como MeCP2, MBD1, MBD2, MBD3 e MBD4). Outra família de repressores, todos contendo zinco, consiste na proteína Kaiso (que se liga a CGCGs) e as proteínas ZBTB4 e ZBTB38.
Tanto metilar pouco quanto metilar demais pode gerar consequências negativas ao organismo, como problemas de formação da espinha bífida, maior incidência de transtornos do neurodesenvolvimento ou certos tipos de câncer.
